Od Darwina do DNA: prosty przewodnik po tym, czym jest ewolucja i jak działa
-
Kasia Lichocka
-
2026-04-13
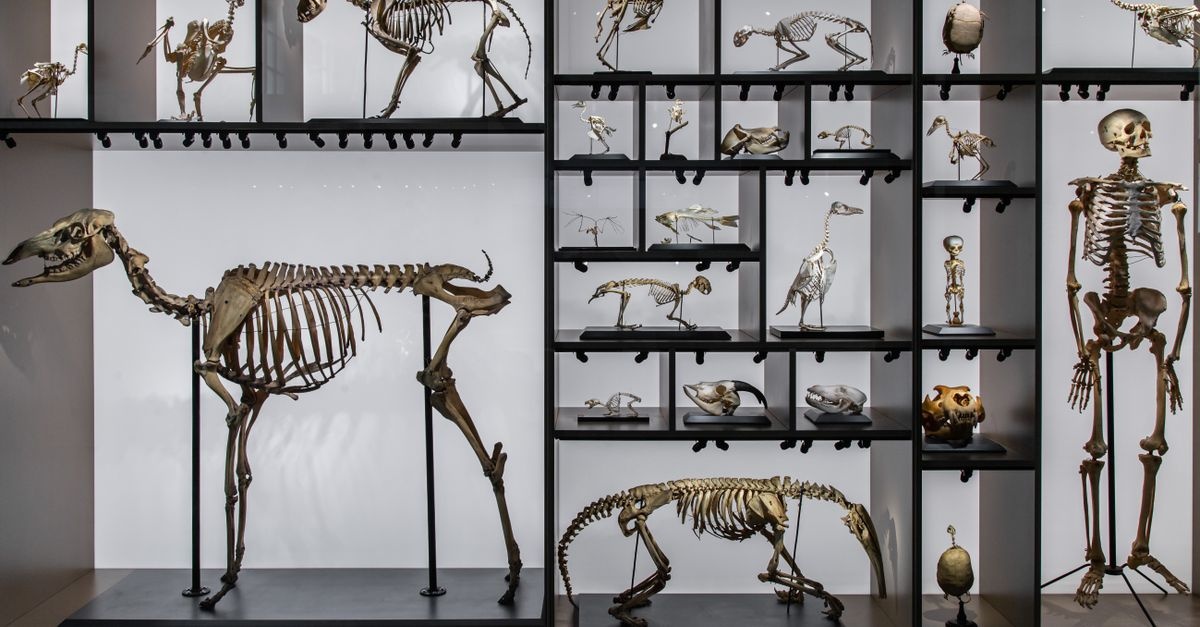
Od Darwina do DNA to opowieść o tym, jak nauka połączyła obserwacje przyrody z molekularną wiedzą o genach, by wyjaśnić, skąd biorą się organizmy i dlaczego są tak różnorodne. Ten przewodnik w przystępny sposób wyjaśnia, czym jest ewolucja, jak działa i dlaczego stanowi filar biologii – od historii idei, przez mechanizmy zmian, aż po praktyczne zastosowania w medycynie i ochronie środowiska.
Co to jest teoria ewolucji i jak działa – w pigułce
Ewolucja biologiczna to zmiana składu genetycznego populacji w czasie. Działa w oparciu o trzy filary: zmienność (osobniki różnią się cechami), dziedziczność (część różnic przechodzi z pokolenia na pokolenie) i różnice w sukcesie reprodukcyjnym (niektóre warianty częściej się rozmnażają). Z tego wynika najpotężniejszy mechanizm ewolucyjny – dobór naturalny – oraz kilka pozostałych: dryf genetyczny, przepływ genów, mutacje i rekombinacja. Gdy pytasz, co to jest teoria ewolucji i jak działa, odpowiedź brzmi: to spójny zestaw zasad i dowodów, który tłumaczy, w jaki sposób zmiany dziedziczne kumulują się i kształtują przystosowania gatunków, a w długich skalach czasu prowadzą do powstawania nowych gatunków.
- Zmiana: nowe warianty genów pojawiają się przez mutacje i rekombinację.
- Selekcja: środowisko i interakcje biologiczne sprawiają, że niektóre warianty stają się częstsze.
- Dziedziczenie: DNA przekazuje informacje, dzięki którym cechy przechodzą między pokoleniami.
W kolejnych częściach przejdziemy od historii tej idei do nowoczesnej wiedzy o DNA i genomach, by zobaczyć, jak teoria sprawdza się w naturze i laboratorium.
Od Darwina do DNA: krótka historia
Darwin, Wallace i pomysł, który zmienił biologię
W połowie XIX wieku Charles Darwin i niezależnie Alfred Russel Wallace zaproponowali, że gatunki nie są stałe, lecz zmieniają się w czasie poprzez dobór naturalny. Darwin zebrał ogrom materiału – od obserwacji zięb na Galapagos po notatki z hodowli gołębi – i pokazał, że drobne różnice, które sprzyjają przetrwaniu i rozmnażaniu, kumulują się, prowadząc do adaptacji. Jego rewolucyjny wniosek: wszystkie organizmy mają wspólnego przodka, a życie jest jak rozgałęziające się drzewo.
Synteza ewolucyjna i genomika
Na początku XX wieku genetyka Mendlowska połączyła się z darwinowską wizją doboru naturalnego, tworząc tzw. nowoczesną syntezę. Uświadomiono sobie, że cechy dziedziczą się dzięki genom, a mutacje wprowadzają surowiec dla doboru. Od końca XX wieku rewolucja DNA i sekwencjonowanie genomów pozwoliły bezpośrednio śledzić zmiany na poziomie molekularnym, konstruować drzewa filogenetyczne i datować rozszczepienia linii rodowych z użyciem zegarów molekularnych. Dzisiejsza teoria łączy obserwacje z paleontologii, ekologii, genetyki populacyjnej i bioinformatyki.
Mechanizmy ewolucji: skąd biorą się zmiany i jak się utrwalają
Mutacje i rekombinacja: źródła nowości
Mutacje to spontaniczne zmiany w sekwencji DNA – mogą dotyczyć pojedynczych liter (substytucje), krótkich wstawek lub delecji, a także większych rearanżacji. Większość jest obojętna lub niekorzystna, ale niektóre bywają korzystne w danym środowisku. Rekombinacja podczas mejozy tasuje materiał genetyczny rodziców, tworząc nowe kombinacje alleli. Wspólnie mutacje i rekombinacja zwiększają zmienność genetyczną, bez której ewolucja nie zachodzi.
- Mutacje punktowe: pojedyncza litera DNA zmieniona na inną.
- Insercje i delecje: dodanie albo utrata fragmentu sekwencji.
- Duplikacje genów: powielone geny mogą z czasem nabyć nowe funkcje.
- Rekombinacja: wymiana fragmentów chromosomów, zwiększająca różnorodność potomstwa.
Nowe warianty powstają w dużych populacjach nieustannie. Dobór, dryf, przepływ genów i ograniczenia rozwojowe decydują, czy i jak te warianty się rozpowszechnią.
Dobór naturalny i płciowy: przystosowanie do środowiska i partnerów
Dobór naturalny działa wtedy, gdy osobniki z pewnymi cechami mają większą przeżywalność lub płodność. Korzystne warianty zwiększają swoją częstość, a populacja stopniowo się do nich upodabnia. Dobór płciowy to odmiana selekcji, która dotyczy sukcesu w pozyskiwaniu partnerów – tłumaczy np. spektakularne ozdoby ptaków, które nie zawsze sprzyjają przeżyciu, ale zwiększają atrakcyjność.
- Dobór kierunkowy: sprzyja jednemu ekstremum cechy (np. większy rozmiar ciała).
- Dobór stabilizujący: faworyzuje wartości pośrednie (zmniejsza wariancję).
- Dobór rozrywający: promuje skrajności (może prowadzić do różnicowania nisz).
Selekcja nie ma planu ani celu; po prostu filtruje istniejącą różnorodność w kontekście aktualnego środowiska. W zmieniającym się świecie „najlepiej przystosowane” nie znaczy „najdoskonalsze”, lecz najlepiej dopasowane do danego miejsca i czasu.
Dryf genetyczny i efekt założyciela: rola przypadku
Dryf genetyczny to losowe wahania częstości alleli, szczególnie silne w małych populacjach. Może sprawić, że neutralne lub nawet lekko niekorzystne warianty utrwalą się przez przypadek. Efekt założyciela pojawia się, gdy nowa populacja powstaje z niewielkiej liczby osobników – zabiera ona tylko fragment różnorodności macierzystej populacji, co może prowadzić do odmienności genetycznej i szybkich zmian.
- Wąskie gardła: chwilowe spadki liczebności redukują różnorodność genetyczną.
- Losowa utrata alleli: w małych próbach rzadkie warianty częściej znikają niezależnie od wartości przystosowawczej.
Przepływ genów i migracje: łączenie populacji
Przepływ genów (migracje, krzyżowanie się) wprowadza do populacji alleli pochodzące z innych grup, zwiększając zmienność i czasem „rozmywając” lokalne przystosowania. Może także przeciwdziałać specjacji, jeśli wymiana genów jest intensywna, lub – przeciwnie – wnosić korzystne warianty przyspieszające adaptację.
DNA, geny i dziedziczenie: od molekuł do cech
Od genotypu do fenotypu
DNA to długa cząsteczka złożona z czterech „liter” (A, C, G, T), które zapisują instrukcje budowy i regulacji organizmu. Geny to odcinki DNA kodujące białka lub pełniące funkcje regulatorowe. Przepływ informacji opisuje tzw. „centralny dogmat”: DNA jest przepisywane na RNA, a RNA tłumaczone na białka. Zmiany w sekwencji mogą modyfikować strukturę białek, ich ilość lub czas i miejsce ekspresji, co przekłada się na fenotyp – obserwowalne cechy organizmu.
- Wariacja addytywna: wiele genów o drobnych efektach kształtuje cechy ilościowe (np. wzrost).
- Pleitropia: jeden gen wpływa na wiele cech.
- Epistaza: efekt genu zależy od wariantów w innych genach.
Takie interakcje sprawiają, że przystosowanie to efekt całych sieci genów, a nie pojedynczych mutacji; ewolucja często działa małymi krokami, ale bywa też skokowa, gdy do gry wchodzą duplikacje lub rearanżacje dużych fragmentów DNA.
Epigenetyka i środowisko
Poza sekwencją DNA działają mechanizmy epigenetyczne (np. metylacja DNA, modyfikacje histonów), które regulują aktywność genów. Część zmian epigenetycznych może być dziedziczona przez kilka pokoleń, jednak długofalową trajektorię ewolucji wyznacza głównie zmienność sekwencji. Środowisko współtworzy selekcję: ten sam wariant bywa korzystny w jednym miejscu, obojętny lub niekorzystny w innym.
Dowody na ewolucję: wiele linii, jeden obraz
Skamieniałości i formy przejściowe
Zapisy kopalne pokazują zmiany w czasie i formy pośrednie: rybo-płazy, wczesne ptaki z zębami i ogonem kostnym, czy przodków waleni z kończynami. Datowanie radiometryczne porządkuje te zmiany chronologicznie. Chociaż zapis nie jest kompletny (skały powstają i niszczą się nierównomiernie), mamy wystarczająco dużo ogniw, by układały się w spójne sekwencje morfologiczne.
Biogeografia: geografia życia
Rozmieszczenie gatunków na świecie odzwierciedla historię geologiczną i bariery geograficzne. Endemizm wyspowy – jak zięby Darwina – świetnie ilustruje, jak izolacja sprzyja różnicowaniu. Kontynenty, które kiedyś były połączone, mają blisko spokrewnione fauny i flory; po ich rozdzieleniu linie rozwojowe poszły własnymi ścieżkami, tworząc rozbieżne adaptacje.
Anatomia porównawcza i homologie
Kończyny kręgowców – skrzydło nietoperza, płetwa wieloryba, ręka człowieka – mają ten sam plan budowy, mimo odmiennych funkcji. To homologie, ślady wspólnego pochodzenia. Analogiczne struktury (np. skrzydła owadów i ptaków) pokazują z kolei konwergencję – podobne rozwiązania ewoluują niezależnie w podobnych warunkach.
Biologia molekularna: sygnatury w genomach
Porównania sekwencji DNA ukazują stopnie pokrewieństwa. Wspólne błędy – wstawki retrotranspozonów w tych samych miejscach, pseudogeny dzielone przez różne gatunki – to silne dowody wspólnego pochodzenia. Tempo zmian neutralnych pozwala kalibrować zegary molekularne i oszacować czasy rozdzielenia linii. Struktury białek i ich konserwowane domeny układają się w wiarygodne drzewa rodowe zgodne z danymi morfologicznymi.
Ewolucja w czasie rzeczywistym
Widzimy ewolucję „na żywo”: antybiotykooporność bakterii, owady uodparniające się na pestycydy, zmiany czasu kwitnienia roślin w cieplejszym klimacie, czy eksperymenty długoterminowe z bakteriami, w których nowe zdolności (np. wykorzystywanie cytrynianu) pojawiały się i utrwalały. Mikroewolucyjne zmiany w krótkim czasie kumulują się w skali tysiącleci i milionów lat, tworząc wzorce makroewolucji.
Mikro- i makroewolucja: dwie skale jednego procesu
Specjacja: jak powstają nowe gatunki
Specjacja to proces, w którym populacje przestają się swobodnie krzyżować i wymieniać genami. Może zachodzić wskutek izolacji geograficznej (allopatrycznej), różnic ekologicznych (sympatrycznej), albo zmian chromosomowych (np. poliploidii u roślin). Bariery reprodukcyjne – różnice w okresach godowych, preferencje środowiskowe, niezgodność gamet – z czasem utrwalają rozdział linii.
- Allopatryczna: fizyczna bariera dzieli populację, a selekcja i dryf prowadzą do rozbieżności.
- Parapatryczna: przylegające populacje różnicują się pod wpływem gradientu środowiskowego.
- Sympatryczna: nowe gatunki powstają w obrębie tego samego obszaru (np. na różnych niszach pokarmowych).
Radiacje adaptacyjne i innowacje kluczowe
Gdy pojawia się nowa nisza lub „innowacja kluczowa” (np. skrzydła, zęby trzonowe zdolne do rozcierania traw), linie rozwojowe mogą ulegać szybkiemu rozgałęzieniu, eksplorując różne strategie życia. Tego typu radiacje adaptacyjne widzimy u pielęgnic w jeziorach afrykańskich, darwinowskich zięb czy ssaków po wyginięciu dinozaurów.
Mity i nieporozumienia: co ewolucja mówi, a czego nie mówi
- Mit: „Ewolucja mówi, że człowiek pochodzi od współczesnych małp”. Fakty: ludzie i inne małpy mają wspólnego przodka; współczesne gatunki są równocześnie istniejącymi gałęziami drzewa życia.
- Mit: „Dobór naturalny działa na dobro gatunku”. Fakty: selekcja zachodzi głównie na poziomie osobników i genów; to, co zwiększa indywidualny sukces reprodukcyjny, jest faworyzowane.
- Mit: „Mutacje zawsze są szkodliwe”. Fakty: większość jest neutralna, część bywa korzystna, a ich efekt zależy od środowiska.
- Mit: „Ewolucja dąży do doskonałości”. Fakty: nie ma celu ani planu; działa na istniejącym „materiałe”, więc często prowadzi do rozwiązań wystarczająco dobrych, nie idealnych.
- Mit: „To tylko teoria”. Fakty: w nauce teoria to dobrze potwierdzony, wyjaśniający model, wsparty licznymi dowodami – nie spekulacja.
Dlaczego to działa? Intuicje i modele
Krajobraz przystosowania i wspinaczka po wzgórzach
Wyobraź sobie „krajobraz przystosowania”, gdzie wysokość terenu to wartość przystosowawcza. Mutacje przesuwają populację na mapie cech; dobór naturalny „pcha” w stronę wyższych punktów. Rekombinacja może łączyć korzystne warianty, ale też zrywać niektóre zestawy. Dryf losowo przemieszcza populację, czasem pozwalając przeskoczyć dolinę do innego wzniesienia. W efekcie różne populacje mogą trafić na różne „szczyty”, co tłumaczy różnorodność rozwiązań w naturze.
Równowaga między doborem a dryfem
Siłę doboru i dryfu często porównuje się przez efektywną wielkość populacji i współczynnik selekcji. W bardzo małych populacjach dryf może „przekrzyczeć” selekcję; w dużych selekcja efektywnie promuje nawet subtelnie korzystne warianty. Dlatego to samo wyzwanie środowiskowe może prowadzić do różnych trajektorii ewolucyjnych w różnych warunkach demograficznych.
Zastosowania teorii ewolucji: od laboratoriów po codzienne życie
Medycyna i zdrowie publiczne
W dobie antybiotykooporności i szybko ewoluujących wirusów myślenie ewolucyjne jest niezbędne. Projektujemy terapie tak, by utrudnić powstanie opornych szczepów (np. terapie skojarzone w HIV), przewidujemy ucieczkę immunologiczną patogenów, mapujemy ewolucję nowotworów w organizmie pacjenta. Zrozumienie doboru na poziomie komórek nowotworowych pozwala planować sekwencje leków i strategie „adaptacyjnej terapii”.
Rolnictwo i biotechnologia
Odporność chwastów i szkodników na herbicydy i insektycydy to klasyczny przykład selekcji w działaniu. Rotacje środków, uprawy mozaikowe, refugia dla podatnych populacji – to narzędzia zarządzania ewolucją w agroekosystemach. W biotechnologii ewolucja kierowana (np. białek) pozwala selekcjonować pożądane funkcje w cyklach mutacja–selekcja.
Ochrona przyrody
Małe, izolowane populacje tracą różnorodność i są podatne na inbreeding. Planowanie korytarzy ekologicznych, translokacje i dbałość o przepływ genów zwiększają szanse przetrwania. Zmiany klimatu wymuszają szybkie adaptacje; identyfikacja lokalnie przystosowanych populacji pomaga w doborze materiału do zalesień czy restytucji gatunków.
Jak naukowcy badają ewolucję: narzędzia i dane
Genetyka populacyjna i modele
Modele (Wrighta–Fishera, Morgana, koalescencja) pozwalają symulować zmiany częstości alleli i wnioskować o przeszłości populacji. Badamy różnorodność genetyczną, rozkłady długości haplotypów, ślady selekcji (tzw. „doły selekcyjne”). Przetwarzamy dane sekwencyjne, by odróżnić sygnał selekcji od demografii.
Drzewa filogenetyczne i zegary molekularne
Algorytmy filogenetyczne (np. maksimum wiarygodności, bayesowskie) budują drzewa pokrewieństwa na podstawie porównań sekwencji. Zegary molekularne, kalibrowane danymi kopalnymi, pozwalają szacować czasy rozdzieleń linii. Spójność między morfologią, biogeografią i danymi molekularnymi wzmacnia wnioski o wspólnym pochodzeniu.
Eksperymenty i obserwacje
Eksperymenty ewolucyjne w kontrolowanych warunkach (bakterie, drożdże, muszki) pozwalają testować hipotezy i śledzić pojawianie się korzystnych mutacji. W terenie badamy dobór naturalny mierząc przeżywalność i sukces reprodukcyjny w zależności od cech – np. zmiany wielkości dziobów zięb w odpowiedzi na dostępność nasion po suszach.
Jak myśleć ewolucyjnie: prosta rama dla rozumienia zjawisk
Jeśli zastanawiasz się, co to jest teoria ewolucji i jak działa w praktyce badawczej i w życiu codziennym, warto stosować kilka kroków myślowych. Dzięki nim łatwiej zrozumieć zarówno przystosowania organizmów, jak i problemy zdrowia publicznego.
- Zidentyfikuj presje selekcyjne: jakie czynniki środowiskowe lub biologiczne różnicują sukces reprodukcyjny?
- Określ źródła zmienności: mutacje, rekombinacja, przepływ genów, plastyczność fenotypowa.
- Sprawdź dziedziczność: czy różnice w cechach są genetycznie uwarunkowane?
- Uwzględnij demografię: rozmiar populacji, struktura, historia wąskich gardeł.
- Weź pod uwagę czas: tempo zmian zależy od pokoleń, siły selekcji i poziomu zmienności.
Najczęstsze pytania i jasne odpowiedzi
Czy ewolucja przeczy unikatowości człowieka? Nie. Tłumaczy, skąd biorą się nasze cechy i ich historia. Równocześnie uznaje wyjątkowe kombinacje zdolności (język, kultura kumulatywna) jako wynik złożonych procesów biologicznych i kulturowych.
Czy złożoność może powstać bez planu? Tak. Małe, kumulujące się kroki, duplikacje genów i kooperacja między elementami prowadzą do strukturyzowania funkcji. Selekcja zachowuje rozwiązania działające wystarczająco dobrze.
Czy da się „zobaczyć” nowe gatunki? Tak, zwłaszcza u organizmów o krótkich pokoleniach i w izolacji (np. rośliny poliploidalne, owady na wyspach). Częściej obserwujemy wczesne etapy – bariery prezygotyczne, rozjazd preferencji ekologicznych.
Skąd wiemy o wspólnych przodkach? Zgodne ze sobą linie dowodów: skamieniałości, geografia gatunków, homologie i porównania genomów. Wzory podobieństw w DNA są trudne do wyjaśnienia bez wspólnego pochodzenia.
Czy ewolucja jest przewidywalna? Do pewnego stopnia. Możemy przewidywać kierunek zmian pod silną selekcją i ograniczeniami rozwojowymi. Ale losowość mutacji i dryfu oraz złożoność interakcji wprowadzają element nieprzewidywalności.
Case studies: jak ewolucja działa w praktyce
Antybiotykooporność: wyścig z czasem
W populacji bakterii zawsze trafiają się rzadkie warianty mniej podatne na antybiotyk. Po podaniu leku większość ginie, ale oporne klony przeżywają i szybko się namnażają. Wielolekowe terapie zmniejszają prawdopodobieństwo, że jedna komórka będzie miała wszystkie potrzebne mutacje; rotacja leków i kontrola dawek utrudnia selekcję na oporność. To nauka w działaniu: znajomość mechanizmów pozwala projektować strategie spowalniania ewolucji patogenów.
Owady i pestycydy: lekcja z pól uprawnych
W intensywnie opryskiwanych uprawach szybko selekcjonują się warianty owadów z mutacjami w miejscach wiązania pestycydów lub z nadekspresją enzymów detoksykacyjnych. Tworzenie refugiów (stref bez oprysków) utrzymuje w populacji osobniki wrażliwe, co spowalnia rozprzestrzenianie oporności – bo krzyżowania z podatnymi rozcieńczają oporne genotypy.
Zmiany klimatu i adaptacje
W ocieplającym się środowisku obserwujemy przesunięcia zasięgów gatunków ku wyższym szerokościom i wysokościom, zmiany fenologii (terminów kwitnienia, migracji), a nawet szybkie modyfikacje cech budowy – np. rozmiar ciała. Tam, gdzie migracja nie nadąża, adaptacja genetyczna bywa jedyną ścieżką; jej tempo zależy od zmienności i siły selekcji.
Język teorii: pojęcia, które warto znać
- Allele: różne wersje tego samego genu.
- Przystosowanie (fitness): względny sukces reprodukcyjny danego wariantu.
- Selekcja naturalna/płciowa: różnice w przeżywalności lub sukcesie w kojarzeniu.
- Dryf: losowe zmiany częstości alleli, silne w małych populacjach.
- Specjacja: powstawanie barier reprodukcyjnych między populacjami.
- Konwergencja: niezależne powstanie podobnych cech.
- Homologia: podobieństwo wynikające ze wspólnego pochodzenia.
Jak opowiadać o ewolucji: proste analogie i ostrożność
Warto pamiętać, że analogie pomagają, ale mogą też wprowadzać w błąd. Krajobrazy przystosowania świetnie intuicyjnie tłumaczą selekcję, ale nie pokazują dynamicznych interakcji między gatunkami i zmiennych środowisk. „Projekt” natury to tylko metafora: ewolucja nie projektuje – działa na tym, co jest, z ograniczeniami historii i rozwoju.
Od pytania do odpowiedzi: plan badania ewolucyjnego
- Hipoteza: formułujemy przewidywanie (np. selekcja sprzyja dłuższym dziobom w latach suszy).
- Dane: zbieramy pomiary cech, sukces reprodukcyjny, sekwencje DNA.
- Analiza: testujemy korelacje, budujemy modele, szukamy sygnałów selekcji.
- Wnioski: oceniamy zgodność wyników z hipotezą i alternatywami (dryf, demografia).
- Replikacja: powtarzamy w innych populacjach, latach, warunkach.
Dygresja filozoficzna: co czyni teorię naukową silną
Teorie naukowe są silne, gdy są spójne, testowalne, przewidujące i płodne (inspirują nowe pytania). Ewolucja spełnia te kryteria: przewiduje wzory podobieństw, kierunki zmian pod selekcją, wyjaśnia zbieżności i rozbieżności morfologiczne oraz informatywne sygnatury w DNA. Miliony niezależnych obserwacji z różnych dziedzin wspierają ją i uzupełniają.
Wyzwania i nowe horyzonty
Współczesna ewolucja poszerza narzędzia: patrzy na sieci genowe, ewolucję rozwoju (evo–devo), wpływ mikrobiomu na przystosowanie gospodarza, ewolucję współpracy i konfliktu, a także na złożone systemy ekologiczne. Dyskutuje się o znaczeniu selekcji wielopoziomowej czy roli dziedziczenia kulturowego. To nie podważa podstaw – raczej rafinuje szczegóły i dodaje mechanizmy pomocnicze do dobrze ugruntowanego rdzenia.
Podsumowanie: od Darwina do DNA jednym spojrzeniem
Teoria ewolucji łączy proste zasady z ogromem danych: zmienność, dziedziczenie i różnice w sukcesie rozmnażania wystarczą, by w czasie kształtować złożone przystosowania i różnorodność gatunkową. DNA dostarcza mechanizmu, selekcja i dryf – dynamiki, a biogeografia i zapis kopalny – kontekstu historycznego. Kiedy pytamy, co to jest teoria ewolucji i jak działa, najkrótsza odpowiedź brzmi: to naukowa rama wyjaśniająca, jak dziedziczne zmiany kumulują się pod wpływem selekcji i przypadku, tworząc drzewo życia, którego gałęzią jesteśmy także my.
Dalsze kroki: jak zgłębiać temat
- Obserwuj lokalną przyrodę: fenologia roślin, zachowania zwierząt, różnice między populacjami.
- Ćwicz myślenie przyczynowe: co mogło sprzyjać danej cesze, a co ją ograniczać?
- Sięgaj po dane: popularnonaukowe omówienia badań, bazy genomów, narzędzia do wizualizacji drzew życia.
Od pierwszych przemyśleń Darwina po wykresy sekwencji DNA – to jedna, spójna historia. Zrozumienie jej pomaga czytać naturę uważniej, projektować mądrzejszą medycynę i podejmować decyzje lepsze dla różnorodności życia na Ziemi.
Zobacz również