Zielona fabryka energii: jak komórki roślin zamieniają światło w życie
-
Karolina Potocka
-
2026-04-13
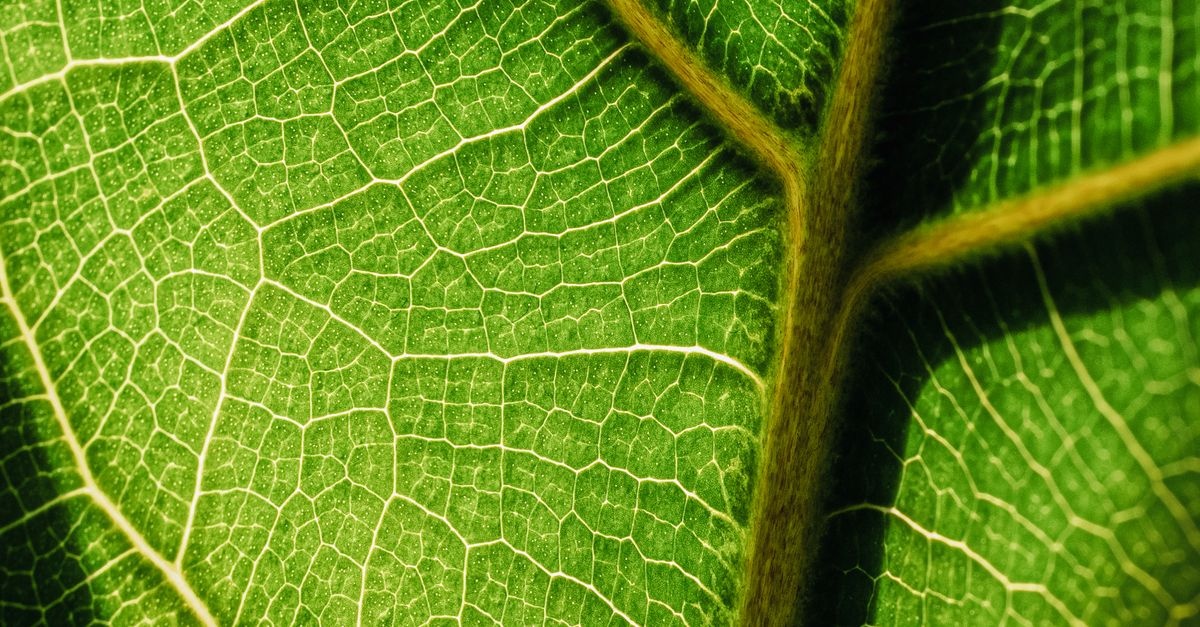
Zielona fabryka energii: dlaczego światło staje się życiem
Wyobraź sobie fabrykę, która nie potrzebuje paliw kopalnych, a jej jedynym „rachunkiem” jest światło słoneczne. W tej fabryce surowcem jest dwutlenek węgla i woda, produktem – cukry i tlen, a maszyny to miliardy białek, barwników i błon pracujących synchronicznie w każdej komórce liścia. Tak właśnie działa fotosynteza – proces, który napędza biosferę i stoi u podstaw niemal wszystkich łańcuchów pokarmowych na Ziemi.
W tym przewodniku rozpakujemy mechanizmy stojące za tym niezwykłym zjawiskiem: od fizyki fotonów i barwników, przez mikroskopijną architekturę chloroplastu, aż po szczegóły reakcji świetlnych i tzw. cyklu Calvina. Naturalnie pokażemy też, jak działa fotosynteza w komórkach roślinnych wtedy, gdy zmienia się natężenie światła, spada dostępność wody, rośnie temperatura lub brakuje składników mineralnych. Wreszcie spojrzymy na strategie C3, C4 i CAM, fotoprotekcję, a także na metody badania i praktyczne wnioski dla rolnictwa oraz technologii.
Czym jest fotosynteza i dlaczego ma znaczenie
Fotosynteza to zestaw reakcji biochemicznych, w których energia promieniowania słonecznego jest przekształcana w energię związaną w wiązaniach chemicznych związków organicznych. Dla roślin oznacza to syntezę cukrów z CO2 i H2O; dla nas – tlen w atmosferze, źródła żywności i surowców, a także naturalny mechanizm sekwestracji węgla.
Fundamentalnie proces dzieli się na dwa moduły: reakcje zależne od światła (zachodzące w błonach tylakoidów) oraz reakcje niezależne od światła, czyli cykl Calvina-Bensona (w stromie chloroplastu). Pierwsze przetwarzają energię fotonów na ATP i NADPH; drugie zużywają te nośniki, by wiązać CO2 w postaci węglowodanów.
Choć intuicyjnie może się wydawać, że fotosynteza to prosty zestaw równań, w praktyce to regulowana na wielu poziomach orkiestra: od doboru długości fali światła, przez sterowanie strumieniem elektronów i gradientem protonowym, po modulację aktywności enzymów przez temperaturę, stężenie CO2 i dostępność wody. Właśnie tu zaczyna się odpowiedź na pytanie, jak działa fotosynteza w komórkach roślinnych w zmiennym środowisku.
Architektura zielonej fabryki: komórka roślinna i chloroplast
Chloroplast – miejsce akcji
Serce fotosyntezy bije w chloroplastach – organellach otoczonych dwiema błonami. Ich wnętrze (stroma) wypełnia przestrzeń z enzymami cyklu Calvina, a system spłaszczonych pęcherzyków – tylakoidów – tworzy stosy zwane granami. To na błonach tylakoidowych znajdują się fotosystemy i łańcuch transportu elektronów.
Ta mikroskopijna architektura nie jest przypadkowa. Zwiększona powierzchnia błon tylakoidowych maksymalizuje wychwyt fotonów oraz umożliwia tworzenie i utrzymanie gradientu protonowego, niezbędnego do syntezy ATP przez syntazę ATP. Stromie przypisano z kolei etap „chemiczny” – wiązanie węgla i syntezę cukrów, co wymaga dobrze zbuforowanego środowiska i enzymów takich jak RuBisCO.
Barwniki i anteny świetlne: chlorofile i karotenoidy
Wychwyt światła zapewniają chlorofile a i b oraz karotenoidy (np. beta-karoten, ksantofile), zorganizowane w kompleksy antenowe (LHC). Chlorofile absorbują głównie promieniowanie niebieskie i czerwone, słabiej zielone, stąd typowa barwa liści. Karotenoidy poszerzają zakres absorpcji i pełnią kluczową rolę w fotoprotekcji, rozpraszając nadmiar energii jako ciepło (mechanizm NPQ).
Energia zaabsorbowana przez anteny jest przekazywana do tzw. centrum reakcji w fotosystemach (PSII i PSI), gdzie zostaje przekształcona w ruch elektronów. Ten pozornie prosty transfer to skomplikowana choreografia ekscytonowa gwarantująca wydajność i minimalizująca straty.
Fizyka światła: widmo, natężenie i użyteczna energia
Rośliny wykorzystują głównie pasmo PAR (Photosynthetically Active Radiation) – zakres 400–700 nm. Nie każde światło jest jednakowo skuteczne. Długości fal w okolicy niebieskiej (około 450 nm) i czerwonej (około 660 nm) są najbardziej produktywne, co tłumaczy skuteczność lamp LED dla upraw, które mieszają te barwy. Z kolei światło zielone, choć słabiej absorbowane przez chlorofil, może penetrować głębsze warstwy liścia i łanu, redukując cienie i poprawiając całkowitą produktywność baldachimu.
Dlaczego liście są zielone?
To wynik kompromisu ewolucyjnego: chlorofile odbijają i transmitują część widma zielonego, minimalizując przegrzewanie i pozwalając na rozdział funkcji pomiędzy warstwy tkanek. Karotenoidy i inne barwniki dopełniają luk, a ich rola ochronna (np. cykl ksantofilowy) zapobiega uszkodzeniom fotoinhibicyjnym w warunkach zbyt silnego światła.
Reakcje zależne od światła: od fotonów do gradientu protonowego
Reakcje świetlne zachodzą na błonach tylakoidowych i rozpoczynają się od absorpcji fotonów przez PSII. Strumień elektronów płynie przez łańcuch przenośników do PSI, co prowadzi do wytworzenia NADPH i ATP. Towarzyszą temu trzy kluczowe zjawiska: fotoliza wody (rozszczepienie H2O), transport elektronów i fotofosforylacja.
Fotosystem II: start strumienia elektronów i tlen jako produkt uboczny
W PSII (centrum reakcji P680) energia fotonów wzbudza elektron, który trafia do pierwotnego akceptora. Aby uzupełnić ubytek, PSII korzysta z „maszyny” złożonej z kompleksu wydzielającego tlen (OEC, zawierającego klaster Mn4CaO5), który utlenia wodę do tlenu cząsteczkowego (O2), protonów i elektronów. To źródło atmosferycznego tlenu – subprodukt procesu niezbędny dla życia tlenowego.
Elektrony z PSII są przenoszone na plastochinon (PQ), który, w formie zredukowanej PQH2, dostarcza je do kompleksu cytochrom b6f. Ten odcinek stanowi wąskie gardło i główne miejsce regulacji przepływu elektronów.
Łańcuch transportu elektronów: od plastochinonu do plastocyjaniny
Kompleks cyt b6f przenosi elektrony dalej, podczas gdy tzw. cykl Q sprzyja pompowaniu protonów do światła tylakoidu. W efekcie rośnie gradient protonowy (ΔpH) i potencjał elektrochemiczny. Elektrony trafiają na plastocyjaninę (PC), miedziowe białko przenośnikowe, która dostarcza je do PSI.
Warto podkreślić, że ten etap decyduje o proporcjach między produkcją ATP i NADPH. Roślina może modulować przepływ, angażując fotofosforylację cykliczną wokół PSI, by zwiększyć podaż ATP bez dodatkowej redukcji NADP+ – to strategiczna korekta bilansu energetycznego cyklu Calvina.
Fotosystem I: finał redukcji NADP+
W PSI (centrum reakcji P700) kolejny foton wzbudza elektron, który poprzez ferredoksynę (Fd) trafia do reduktazy NADP+ (FNR), gdzie powstaje NADPH. To wysokoenergetyczny nośnik redukcyjny, niezbędny w reakcji przekształcania 3-fosfoglicerynianu w triozy w cyklu Calvina.
W sytuacjach nadwyżki redukcji (gdy brakuje akceptorów elektronów, np. CO2), roślina uruchamia mechanizmy ochronne: NPQ (rozpraszanie nieproduktywne) oraz przełącza strumień na ścieżki alternatywne (cykliczny przepływ elektronów, tzw. pseudocykliczny transport przez Mehlera), by zapobiec powstawaniu reaktywnych form tlenu (ROS).
Fotofosforylacja i syntaza ATP: chemiosmoza w działaniu
Zgromadzone w świetle tylakoidu protony napędzają syntazę ATP (CF0-CF1). Protony przepływające przez kanał powodują rotację części enzymu i mechaniczne sprzężenie umożliwiające syntezę ATP z ADP i Pi – to przykład chemiosmozy. Produkty reakcji świetlnych – ATP i NADPH – trafiają do stromy, gdzie „zasilą” reakcje wiązania węgla.
Istnieją dwie drogi powstawania ATP: fotofosforylacja niecykliczna (sprzężona z produkcją NADPH) i cykliczna wokół PSI, która poprawia stosunek ATP/NADPH, gdy cykl Calvina wymaga więcej energii niż redukcji.
Reakcje niezależne od światła: cykl Calvina-Bensona
Drugi moduł fotosyntezy zachodzi w stromie i polega na wiązaniu CO2 w organiczne cząsteczki. Jego sercem jest RuBisCO – najbardziej rozpowszechniony enzym na Ziemi – oraz trzy etapy: karboksylacja, redukcja i regeneracja akceptora CO2 (RuBP).
Karboksylacja: wejście CO2 do obiegu
RuBisCO katalizuje przyłączenie CO2 do rybulozo-1,5-bisfosforanu (RuBP), tworząc nietrwały intermediat, który rozpada się na dwie cząsteczki 3-fosfoglicerynianu (3-PGA). To pierwszy stabilny produkt u roślin C3. Aktywność RuBisCO jest modulowana przez karbamoilację i obecność RuBisCO-activase, a także przez temperaturę, pH stromy i stężenie CO2/O2.
Redukcja i powstawanie trioz
3-PGA ulega fosforylacji do 1,3-bisfosfoglicerynianu (z udziałem ATP), a następnie redukcji do gliceraldehydo-3-fosforanu (G3P) przy udziale NADPH. Część G3P opuszcza cykl, dając początek cukrom (np. skrobi, sacharozie), a większość wraca do obiegu, by odtworzyć RuBP.
Regeneracja RuBP i bilans energetyczny
Regeneracja RuBP to seria reakcji przegrupowań atomów węgla z udziałem transketolaz i aldolaz. Pełna synteza jednej cząsteczki glukozy w klasycznym modelu wymaga około 6 cząsteczek CO2, 18 ATP i 12 NADPH. Faktyczne koszty mogą się zmieniać w zależności od występowania fotorespiracji i przepływów alternatywnych.
Warto dodać, że światło reguluje cykl Calvina nie tylko pośrednio (dostarczając ATP i NADPH), ale także bezpośrednio – poprzez szlak tioredoksynowy, zmieniający stan redoks niektórych enzymów, i alkalozację stromy (wzrost pH), co sprzyja aktywacji RuBisCO.
Jak to wszystko łączy się w całość?
By zrozumieć, jak działa fotosynteza w komórkach roślinnych, trzeba zobaczyć ją jako sprzężony układ energetyczno-redoksowy. Światło aktywuje fotosystemy, które przepompowują protony i redukują NADP+, a powstałe ATP/NADPH płyną do stromy. Tam cykl Calvina zużywa je w tempie zależnym od podaży CO2, temperatury i stanu enzymów. Gdy CO2 brakuje (zamknięte szparki przy suszy), spada tempo redukcji 3-PGA, rośnie ryzyko nadmiaru energii i pojawiają się mechanizmy fotoprotekcji.
W sprzyjających warunkach przepływ jest zrównoważony: elektronów tyle, ile potrzeba, gradient protonowy skalibrowany, a produkty fotosyntezy kierowane do syntezy skrobi w chloroplastach i sacharozy w cytoplazmie, skąd wędrują floemem do tkanek odbiorczych (korzeni, owoców, nasion).
Czynniki ograniczające i regulacja: światło, CO2, woda, temperatura
Światło: natężenie, jakość widma i fotoinhibicja
Wzrost natężenia promieniowania zwiększa szybkość fotosyntezy aż do punktu nasycenia, po czym krzywa się wypłaszcza. Zbyt silne światło grozi fotoinhibicją: uszkodzeniem PSII i wzrostem ROS. Rośliny bronią się poprzez:
- NPQ – rozpraszanie nadmiaru energii w antenach LHC (cykl ksantofilowy, białko PsbS),
- przełączenie na przepływ cykliczny wokół PSI, by zwiększyć ATP i odciążyć akceptory elektronów,
- naprawę PSII (wycinanie i resynteza białka D1).
Jakość widma też ma znaczenie: czerwone i niebieskie fotony są bardzo efektywne, ale dodatek zielonego może poprawić równomierność oświetlenia w gęstym listowiu.
Dwutlenek węgla i gospodarka wodna: rola aparatów szparkowych
Wlot CO2 do liścia kontrolują aparaty szparkowe. W warunkach suszy rośliny zamykają szparki, ograniczając dyfuzję CO2 i spowalniając cykl Calvina – co z kolei zmienia relacje ATP/NADPH i zwiększa ryzyko akumulacji energii w aparacie świetlnym. To klucz do zrozumienia, jak działa fotosynteza w komórkach roślinnych podczas stresu wodnego.
Optymalizacja obejmuje kompromis między asymilacją CO2 a transpiracją. Część roślin (C4, CAM) wyewoluowała sprytne sposoby na minimalizowanie strat wody przy zachowaniu wysokiej wydajności wiązania węgla.
Temperatura i enzymatyka: RuBisCO, aktywacja i fotorespiracja
Temperatura wpływa na kinetykę enzymów i rozpuszczalność gazów. W wyższych temperaturach rośnie powinowactwo RuBisCO do O2 względem CO2, co nasila fotorespirację – ścieżkę „ratunkową”, w której RuBisCO działa jak oksygenaza. Fotorespiracja odzyskuje część węgla, ale zużywa ATP i emituje CO2, obniżając wydajność netto.
Rośliny C4 (np. kukurydza) minimalizują ten problem przez koncentrację CO2 w komórkach wieńcowych, a CAM – przez nocne pobieranie CO2. W ten sposób utrzymują wysoką efektywność nawet w cieple i przy ograniczonej wodzie.
Składniki mineralne i stres oksydacyjny
Pigmenty i białka fotosyntetyczne zawierają Mg (w centrum chlorofilu), N (aminokwasy), Fe i Cu (w przenośnikach elektronów). Niedobory prowadzą do chloroz i spadku aktywności fotosystemów. Nadmiar energii i zaburzenia przepływu elektronów sprzyjają powstawaniu ROS (np. singletowego tlenu, nadtlenku), co wymaga działania enzymów ochronnych: superoksydodysmutazy, katalazy, peroksydaz, a także niefotosyntetycznych antyoksydantów (askorbinian, glutation).
Różne drogi do tego samego celu: C3, C4 i CAM
Choć rdzeń fotosyntezy jest wspólny, rośliny ewoluowały alternatywne strategie wiązania węgla, by pokonać ograniczenia klimatyczne i biochemiczne.
Rośliny C3: klasyczny szlak
Większość gatunków (pszenica, ryż, soja) stosuje szlak C3. To ekonomiczne rozwiązanie w warunkach umiarkowanego klimatu, lecz podatne na straty przez fotorespirację w upale i przy niskim stężeniu CO2. Wydajność C3 silnie zależy od sprawności regulacji aparatów szparkowych i kondycji RuBisCO.
Rośliny C4: koncentracja CO2 i anatomiczna specjalizacja
Gatunki C4 (kukurydza, trzcina cukrowa, sorgo) przeprowadzają wstępne wiązanie CO2 w mezofilu poprzez PEPC (fosfoenolopirogronianowa karboksylaza), tworząc czterowęglowe kwasy (np. jabłczan), które są transportowane do komórek wieńcowych. Tam odtleniane podnoszą lokalne stężenie CO2 wokół RuBisCO, ograniczając fotorespirację. Wymaga to dodatkowego ATP, ale zyskuje na wydajności w gorących, suchych warunkach.
Rośliny CAM: nocny łowca węgla
Rośliny CAM (kaktusy, ananasy) otwierają szparki nocą, gdy jest chłodniej i wilgotniej, by gromadzić CO2 jako jabłczan w wakuolach. Za dnia, przy zamkniętych szparkach, uwalniają CO2 w chloroplastach, utrzymując wysoką efektywność mimo skrajnej oszczędności wody. To znakomity przykład dostosowania, który zmienia sposób, jak działa fotosynteza w komórkach roślinnych bez zmiany jej podstawowej architektury.
Fotoprotekcja i stabilność: gdy światła jest za dużo
Wysokie natężenia i fluktuacje światła zmuszają aparat fotosyntetyczny do ciągłej autoasekuracji. Poza NPQ i naprawą PSII, ważne są:
- Równoważenie PSI/PSII – reorganizacja kompleksów LHCII między fotosystemami (state transitions),
- Regulacja redoks – sterowanie aktywnością enzymów cyklu Calvina przez tioredoksyny,
- Antyoksydanty – askorbinian, glutation, tokoferole, karotenoidy.
Zdolność do szybkiej adaptacji decyduje o tym, czy fotosynteza osiąga pełnię możliwości, czy też ulega długotrwałej fotoinhibicji, zwłaszcza pod wpływem chłodu i wiatru przy silnym słońcu.
Jak bada się fotosyntezę? Narzędzia i wskaźniki
Fluorescencja chlorofilu: Fv/Fm i PAM
Fluorymetry PAM mierzą fluorescencję chlorofilu, umożliwiając ocenę sprawności PSII. Wskaźnik Fv/Fm (maksymalna wydajność kwantowa PSII po adaptacji do ciemności) bliski 0,83 wskazuje na dobrą kondycję aparatu fotosyntetycznego u roślin C3. W pomiarach dynamicznych używa się też parametrów takich jak ΦPSII, qP, NPQ, pozwalających śledzić bilans energii w czasie rzeczywistym.
Wymiana gazowa i krzywe świetlne
Analizatory gazowe mierzą strumień asymilacji CO2 (A) i transpiracji (E), wraz z przewodnością szparkową (gs). Krzywe A/PPFD pokazują nasycanie się fotosyntezy ze światłem, a krzywe A/Ci ujawniają ograniczenia dyfuzyjne i biochemiczne (RuBisCO, regeneracja RuBP). Wspólnie te metody dają pełen obraz tego, jak działa fotosynteza w komórkach roślinnych – od zbierania energii, przez transport elektronów, po wiązanie węgla.
Fotosynteza a środowisko i technologie
Sekwestracja CO2 i klimat
Fotosynteza to naturalny silnik cyklu węglowego. Zwiększanie produktywności ekosystemów (np. przez zalesianie, agroforestry, regeneracyjne rolnictwo) wzmacnia sekwestrację węgla w biomasie i glebach, wspierając łagodzenie zmian klimatu. Jednocześnie zmiany klimatyczne (ciepło, susze) modyfikują to, jak sprawnie działa aparat fotosyntetyczny.
Sztuczna fotosynteza i rolnictwo precyzyjne
Inspirując się naturą, naukowcy pracują nad sztuczną fotosyntezą – systemami, które naśladują PSII i PSI do produkcji paliw słonecznych. W rolnictwie popularność zyskują LED-y o regulowanym widmie, które pozwalają sterować nie tylko tempem fotosyntezy, lecz także morfogenezą roślin. To praktyczny przykład, jak wiedza o spektrach absorpcji i reakcji świetlnych przekłada się na wyższe plony i lepszą jakość płodów rolnych.
Najczęstsze mity i klarowne fakty
- Mit: „Fotosynteza zachodzi tylko w dzień.” Fakt: Reakcje świetlne – tak, ale cykl Calvina może być kontynuowany chwilę po zachodzie, dopóki starczy ATP/NADPH.
- Mit: „Zielone światło jest bezużyteczne.” Fakt: Ma mniejszą absorpcję przez chlorofil, ale penetruje głębiej w łanie, poprawiając wydajność całego baldachimu.
- Mit: „Więcej światła zawsze oznacza lepszą fotosyntezę.” Fakt: Powyżej punktu nasycenia rośnie ryzyko fotoinhibicji i stresu oksydacyjnego.
- Mit: „Tlen w fotosyntezie pochodzi z CO2.” Fakt: Pochodzi z H2O, uwalniany podczas fotolizy w PSII.
Praktyczne wskazówki: jak wspierać wydajność fotosyntezy
- Zbilansowane widmo i natężenie światła – dostosuj PPFD i barwy (czerwień/niebieski/odrobina zieleni) do gatunku i fazy rozwoju.
- Kontrola klimatu – utrzymuj temperaturę w optymalnym zakresie i unikaj ekstremów, które nasilają fotorespirację.
- Nawadnianie i przewodność szparkowa – stabilna wilgotność wspiera pobór CO2 bez nadmiernej transpiracji.
- Odżywianie mineralne – zadbaj o Mg, N, Fe, Mn i S, kluczowe dla pigmentów i łańcucha elektronowego.
- Monitoring – używaj wskaźników takich jak Fv/Fm, ΦPSII i wymiana gazowa do wczesnego wykrywania stresu.
Studium przypadku: od liścia do plonu
Wyobraźmy sobie szklarnię z pomidorami. Operator ustawia PPFD na 250–300 μmol m−2 s−1 dla młodych roślin, stopniowo zwiększając do 400–600 w fazie generatywnej. Widmo LED zawiera szczyt czerwony (~660 nm) i niebieski (~450 nm) z domieszką zielonego, by poprawić penetrację światła. Temperatura utrzymywana jest w okolicach 22–24°C w dzień i 18–20°C nocą, wilgotność względna na poziomie 60–70%, a CO2 wzbogacone do 700–900 ppm. Taki zestaw warunków balansuje reakcje świetlne i cykl Calvina, minimalizując fotorespirację i stymulując akumulację asymilatów w owocach.
Regularne pomiary Fv/Fm oraz krzywych A/PPFD pozwalają wcześnie wykryć akumulację stresu świetlnego lub niedobory składników. Tak integruje się wiedzę o tym, jak działa fotosynteza w komórkach roślinnych, z praktyką uprawową.
Powiązania systemowe: od cząstek do biosfery
Zdrowy chloroplast to nie tylko zielony kolor liścia – to węzeł sieci, która łączy fizykę światła, biochemię błon, enzymologię stromy, hydraulikę rośliny, a nawet zachowanie aparatów szparkowych modulowane sygnałami hormonalnymi (np. ABA przy suszy). To, jak działa fotosynteza w komórkach roślinnych, przekłada się na wzrost, plon, zdolność adaptacji do zmian klimatu i jakość żywności.
Kiedy rozumiemy potencjalne punkty ograniczające – od niedoboru elektronów w cieniu po nadmiar energii w pełnym słońcu – możemy projektować rozwiązania: dobór odmian, praktyki agrotechniczne, architekturę baldachimu, a nawet inteligentne sterowanie światłem i klimatem.
Podsumowanie: światło ujarzmione
Fotosynteza to niezwykły przykład inżynierii molekularnej opracowanej przez ewolucję. Od absorpcji fotonów w antenach LHC, przez precyzyjne pośrednictwo PSII, łańcucha b6f i PSI, aż po chemiosmozę i cykl Calvina – każdy etap działa tak, by minimalizować straty i maksymalizować sprawność. Jednocześnie układ ten jest elastyczny: reguluje się światłem, CO2, wodą i temperaturą, broni przed stresem i adaptuje do skrajnych warunków, jak w strategiach C4 i CAM.
Zrozumienie, jak działa fotosynteza w komórkach roślinnych, nie jest tylko ciekawostką biologiczną. To klucz do bezpieczeństwa żywnościowego, ochrony klimatu i nowych technologii energetycznych. Zielona fabryka energii pracuje nieprzerwanie nad naszymi głowami – w każdym liściu, w każdym lesie – zamieniając światło w życie.
Słowniczek skrótów i pojęć (dla szybkiej orientacji)
- PSII/PSI – fotosystem II/I, centra reakcji inicjujące przepływ elektronów
- PQ/PC/Fd/FNR – plastochinon/plastocyjanina/ferredoksyna/reduktaza NADP+
- ATP/NADPH – nośniki energii i elektronów dla cyklu Calvina
- RuBisCO/RuBP/3-PGA/G3P – enzym i metabolity cyklu Calvina-Bensona
- NPQ – niefotochemiczne wygaszanie fluorescencji (fotoprotekcja)
- ROS – reaktywne formy tlenu, powstające przy nadmiarze energii
- C3/C4/CAM – strategie wiązania CO2 w roślinach
Najważniejsze wnioski w punktach
- Fotosynteza łączy reakcje świetlne (produkcja ATP/NADPH) z cyklem Calvina (wiązanie CO2).
- Sprawność zależy od światła, CO2, wody, temperatury i odżywienia mineralnego.
- Fotoprotekcja (NPQ, antyoksydanty) chroni przed fotoinhibicją i ROS.
- Strategie C4 i CAM minimalizują fotorespirację i zużycie wody.
- Nowoczesne techniki pomiarowe (fluorescencja, wymiana gazowa) pozwalają diagnozować i optymalizować wydajność.
Na zakończenie
Choć mechanizmy fotosyntezy są niezwykle złożone, można je zrozumieć jako sekwencję logicznych kroków: zbierz energię światła, zamień ją w gradient i prąd elektronów, zrównoważ proporcje ATP/NADPH, a następnie wykorzystaj je, by utrwalić węgiel z CO2 w postaci cukrów. Właśnie tak, w największym skrócie, działa nasza planetarna zielona fabryka energii.
Zobacz również